
Contenido del artículo
Resumen
El virus de la viruela símica (MPXV) ha causado un escenario epidemiológico inusual: una epidemia dentro de una pandemia (COVID-19). A pesar de la capacidad evolutiva y adaptativa inherente de los poxvirus, uno de los posibles desencadenantes de la aparición de esta epidemia fue el cambio en la situación de la vacunación contra ortopoxvirus y de los programas de erradicación. Este brote epidémico de HMPX se propagó por todo el mundo, con una frecuencia notable en Europa, América del Norte y América del Sur. Debido a estas particularidades, el objetivo del presente estudio fue evaluar y comparar los casos de HMPX en estas regiones geográficas mediante el modelamiento matemático logístico y de Gompertz durante un año desde su inicio. En el modelo logístico, estimamos las mayores tasas de contagio (personas por día) de 690, 230, 278 y 206 para el mundo, Europa, América del Norte y América del Sur, respectivamente. Los valores equivalentes de las mayores tasas de contagio en el modelo de Gompertz fueron 696, 268, 308 y 202. La prueba de Kruskal–Wallis indicó medias diferentes entre las regiones geográficas afectadas por la HMPX en cuanto a la velocidad de casos, y la prueba de Wilcoxon por pares indicó la ausencia de diferencias significativas entre las medias de la velocidad de casos de Europa y América del Sur. Los valores del coeficiente de determinación (R2) en el modelo logístico variaron de 0.8720 a 0.9023, y en el modelo de Gompertz oscilaron entre 0.9881 y 0.9988, lo que indica un mejor ajuste a los datos reales al usar el modelo de Gompertz. Los números reproductivos básicos (\(R_{0}\)) estimados fueron más consistentes en el modelo logístico, y variaron de 1.71 a 1.94 con el método gráfico y de 1.75 a 1.95 con el método analítico. La evaluación comparativa de estos enfoques de modelamiento matemático permitió establecer el modelo de Gompertz como el de mejor ajuste a los datos y el modelo logístico como el más adecuado para el \(R_{0}\). No obstante, ambos modelos representaron con éxito los datos reales de casos de HMPX. El presente estudio estimó datos epidemiológicos relevantes para comprender mejor las similitudes y diferencias geográficas en la dinámica de la HMPX.
1. Introducción
El virus de la viruela símica (también conocida como mpox) (MPXV) es un virus zoonótico con características clínicas similares a las de la viruela. El MPXV pertenece a la familia Poxviridae, y la partícula viral es un virión envuelto con forma de ladrillo, de 150–300 nm de tamaño, que contiene un genoma de ADN bicatenario de 200 kpb en promedio [1]. Aunque el origen del MPXV se encuentra en los animales, aún no se ha determinado si los reservorios hospederos del virus y la infección se presentan en especies como ratones, ratas, conejos, hámsteres, monos, humanos, perros de las praderas, marmotas, jerbos y puercoespines [2].
El virus se aisló inicialmente en 1958 a partir de lesiones vesiculopustulares encontradas en monos con fiebre (macacos de Java) en Dinamarca. Sin embargo, la primera infección registrada de viruela símica humana (HMPX) ocurrió en 1970 en la República Democrática del Congo, seguida de brotes esporádicos en ocho países africanos entre 1970 y 1999, que dieron lugar a aproximadamente 923 casos de HMPX [3]. El primer caso de HMPX fuera de África se notificó en 2003 en Estados Unidos, con 47 casos. Entre 2000 y 2020 se notificó un total de 20,237 casos de HMPX en 16 países [4]. Aunque el MPXV había estado confinado principalmente a países africanos, con brotes ocasionales en otros lugares, en mayo de 2022 se documentó un caso de HMPX en el Reino Unido. Desde entonces y hasta febrero de 2023, el virus se ha propagado rápidamente a más de 100 países, con un total de 85,536 casos confirmados, la mayoría de ellos concentrados en Europa, EE. UU. y América del Sur [5].
La transmisión zoonótica del MPXV se produce por contacto directo con animales infectados o por su consumo. La transmisión de persona a persona suele producirse por contacto indirecto con secreciones respiratorias, lesiones cutáneas u objetos contaminados. Sin embargo, el contacto directo sigue siendo un factor de riesgo de transmisión bien conocido [6]. La infección por MPXV causa una enfermedad autolimitada con un periodo de incubación de 4–14 días, y se caracteriza por cefalea, malestar general, dolor de espalda, fatiga, letargo y fiebre de bajo grado. La erupción vesiculopustular en el rostro y el tronco aparece 12–26 días después de la exposición, y los peores desenlaces clínicos, como bronconeumonía, encefalitis y pérdida de la visión, se manifiestan en pacientes inmunocomprometidos [6].
Desde la erradicación de la viruela mediante el virus vaccinia en 1980, han transcurrido casi cuatro décadas sin ningún programa de vacunación contra ortopoxvirus. En consecuencia, la interrupción de la vacunación contra la viruela puede haber contribuido a una reducción, o incluso a la pérdida, de la inmunidad de rebaño frente a la HMPX, lo que podría conducir a un aumento de la propagación del virus [7]. En la actualidad, el tratamiento de la HMPX es principalmente de soporte, y los antivirales como el tecovirimat, el cidofovir y el brincidofovir conllevan efectos adversos graves. Además, solo tres vacunas aprobadas por la FDA han demostrado eficacia en ensayos clínicos; sin embargo, actualmente no hay datos disponibles sobre su efectividad en condiciones reales [8]. La transmisión prolongada y rápida en regiones no endémicas de todo el mundo ha suscitado preocupación por la posible evolución del MPXV hacia un patógeno más letal. Asimismo, la falta de tratamiento pone de relieve la necesidad de estrategias que mejoren el seguimiento y la cuantificación epidemiológicos [9].
Desde la década de 1920 se han desarrollado enfoques de modelamiento matemático para comprender el crecimiento dinámico y los patrones de transmisión viral [10]. Se han propuesto modelos basados en la regresión logística para detectar y predecir patrones epidemiológicos de la COVID-19, que han mostrado resultados similares entre la dinámica del virus en un escenario real y la calculada por el modelo [11–13]. En el modelamiento matemático basado en una ecuación diferencial, junto con el modelo logístico, existe otro modelo ampliamente utilizado en la dinámica del crecimiento poblacional: el denominado modelo de Gompertz, que se ha empleado extensamente en el crecimiento tumoral y epidemiológico. Gompertz propuso inicialmente este modelo en 1825 para estudiar la mortalidad en poblaciones humanas. Desde que Casey lo utilizó en 1934 para el ajuste de curvas de crecimiento tumoral [14, 15], su uso en la oncología matemática ha sido omnipresente, porque la curva solución de la ecuación diferencial empleada en el modelo de Gompertz nos permite modelar un crecimiento saturado con un punto de inflexión no simétrico, a diferencia del modelo logístico, cuya curva sigmoidea es simétrica [16, 17]. En epidemiología, se ha utilizado junto con otros modelos, como el logístico generalizado, el de Von Bertalanffy y el de Richards, entre otros, para el ajuste de curvas que muestran, por ejemplo, la población de personas afectadas por la COVID-19 [18, 19].
La infección por el MPXV se ha modelado previamente mediante sistemas de ecuaciones diferenciales ordinarias de primer orden [20, 21] y de orden fraccionario [22, 23], que han considerado tanto la interacción con un reservorio para la transmisión zoonótica (roedores) como la diseminación en la población humana y, en algunos casos, también han considerado el aislamiento de los enfermos y la vacunación, que proporciona inmunidad permanente. Aunque los modelos basados en sistemas de ecuaciones diferenciales ofrecen una explicación mucho más detallada de los mecanismos de propagación poblacional y permiten evaluar simultáneamente varias poblaciones epidemiológicas además de la de infectados, como la de susceptibles, latentes o recuperados, en algunos estudios se ha demostrado que los modelos que caracterizan una única población se ajustan bien a los datos [18, 24, 25].
Este estudio tuvo como objetivo evaluar y comparar los casos de HMPX en distintas regiones continentales mediante las ecuaciones diferenciales logística y de Gompertz durante 12 meses de la epidemia. Además, estimamos el número reproductivo básico para cada modelo.
2. Materiales y métodos
2.1. Recolección de datos
El conjunto de datos principal utilizado para analizar las infecciones por viruela símica en el presente estudio se obtuvo del informe integral de la Organización Mundial de la Salud (OMS) sobre las tendencias mundiales de la viruela símica para 2022–2023 [26]. La variable de datos investigada correspondió al número agregado de casos o infecciones, donde los “casos totales” se definieron como la suma de los casos confirmados de viruela símica dentro del periodo especificado, del 1 de mayo de 2022 al 30 de abril de 2023 (Tabla S1).
Para dilucidar el panorama epidemiológico de la viruela símica, se empleó una representación gráfica que ilustra la evolución temporal de la enfermedad en el mundo y en los continentes con las tasas de incidencia más altas, a saber, Europa, América del Norte y América del Sur. Se presentó una visión global integral, tratándola como una sola entidad durante el intervalo de tiempo especificado.
2.2. Modelamiento matemático
El modelamiento matemático de las series de tiempo de la viruela símica, considerando la variable de casos (o personas infectadas diagnosticadas), se realizó mediante la regresión logística y la función de Gompertz. Estos modelos utilizan la función sigmoide para describir el crecimiento de una variable con velocidades más lentas al inicio y al final de un periodo.
El lenguaje de programación R, dentro del entorno de desarrollo integrado (IDE) R Studio, incorpora diversos paquetes, entre ellos, aunque no exclusivamente, tidyverse y ggplot2, como se detalla en las secciones siguientes. Estos paquetes se utilizaron para visualizar y modelar los resultados obtenidos [27].
2.2.1. Modelo logístico
El fundamento de este modelo se basó en el marco de modelamiento empírico propuesto por Bronshtein y Semendiaev, y se derivó como una extensión del modelo logístico de Verhulst–Pearl [28, 29]. En el contexto de esta investigación, este modelo se empleó para evaluar y proyectar los patrones temporales de los casos de viruela símica en regiones geográficas específicas, a saber, el mundo, Europa, América del Norte y América del Sur.
La expresión matemática utilizada para cuantificar la dinámica temporal de la viruela símica en estas poblaciones definidas puede caracterizarse como una dispersión logística, y se formula de la siguiente manera:
\[N=\frac{M}{(1+Q\times e^{-k\times t})} \tag{1}\]
En esta representación matemática, el símbolo “M” denota la capacidad máxima de ocurrencia de casos, “Q” denota una constante preestablecida, “k” representa un factor de proporcionalidad, “t” denota el tiempo transcurrido medido en días y “N” representa el número de casos observados.
La fórmula utilizada para calcular la capacidad máxima “M” para los tres eventos distintos requiere considerar tres variables estocásticas independientes, junto con sus valores dependientes asociados obtenidos del conjunto de datos. Este cálculo se realiza de acuerdo con la siguiente expresión matemática [13]:
\[M=\frac{A\times B-I^{2}}{A+B-2I} \tag{2}\]
El valor inicial, denotado como “A”, corresponde a la variable dependiente en el punto de inflexión de la variable independiente “t1”. Si el punto de inflexión calculado (valor medio) no es un número entero, se redondea al siguiente valor entero disponible más alto. Esta regla de redondeo se utilizará de manera similar para los parámetros siguientes e incluirá cualquier valor vinculado. El segundo valor, designado como “B”, representa el valor de la variable dependiente correspondiente al valor final de la variable independiente “t2”. El tercer valor, denotado como “I”, está asociado con el valor de la variable dependiente relacionado con la semisuma de las variables independientes “t1” y “t2,” expresada como “t3 = (t1 + t2)/2”. Posteriormente, el valor determinado de “M” se inserta en el modelo logístico. A continuación, el modelo logístico se somete a una linealización matemática y se emplea el método de mínimos cuadrados para obtener la siguiente forma: \(\ln \left(\frac{M}{N}-1\right)=lnQ+k\times t\); una ecuación lineal: \(y=A+Cx\), donde \(y=\ln \left(\frac{M}{N}-1\right)\), \(x=t\) y \(A=lnQ\).
La ejecución del procedimiento estadístico de regresión lineal implica ingresar pares de datos (x, y) \(\left[t,\ln \left(\frac{M}{N}-1\right)\right]\) y, tras ingresar todos los pares de datos, determinar los valores de ln Q y k, donde k representa la pendiente de la ecuación lineal (específicamente, el coeficiente ‘C’ en la ecuación: \(y=A+Cx\), siendo \(A\) igual a \(lnB\) y, por lo tanto, \(Q=e^{A}\). Esto se logra derivando la Ecuación (1), lo que conduce al establecimiento de la Ecuación (3). Luego se emplea la Ecuación (2) para determinar el número máximo posible de personas infectadas (M), un valor crucial para los cálculos posteriores. Para estimar la tasa de incidencia de los casos de viruela símica en las poblaciones especificadas, derivamos el modelo logístico establecido, caracterizado por la siguiente representación matemática:
\[\frac{dN}{dt}=\left[\frac{M\times Q\times k\times e^{-k\times t}}{{(1+Q\times e^{-k\times t})}^{2}}\right] \tag{3}\]
Para determinar el punto de tiempo crítico, denotado como (tc), correspondiente al momento en que el número de casos de viruela símica alcanza su máximo, derivamos la Ecuación (3), la igualamos a cero y posteriormente despejamos (tc):
\[t_{c}=-\frac{1}{k}\times \ln \left(\frac{1}{Q}\right) \tag{4}\]
2.2.2. Modelo de Gompertz
El modelo de Gompertz supone que la tasa de crecimiento de una población depende de la densidad, es decir, que el número de individuos en un instante posterior depende del número de individuos previo, y cuanto mayor sea el número inicial de individuos, mayor será su tasa de crecimiento. Forma parte además de las ecuaciones diferenciales ordinarias formalizadas del modelo, cuyas soluciones son funciones sigmoides y, en el caso particular que presentamos, dependen de tres parámetros para su ajuste posterior, y cuya característica principal es que el punto de inflexión de la curva se ubica antes del punto medio de la curva, lo que le confiere un aspecto asimétrico; esto significa que puede reflejar procesos en los que se produce un crecimiento exponencial en las etapas tempranas de la epidemia que luego se desacelera [14, 24].
La ecuación diferencial de Gompertz puede plantearse como una modificación de la ecuación logística, dada como \(\frac{dN}{dt}=rN\left(1-\frac{\ln \left(N\right)}{\ln \left(\alpha \right)}\right),\) donde es la tasa de infección (día−1), α es el número máximo acumulado de personas infectadas en cada región, y N = N(t) es el número acumulado de infectados desde el inicio de la epidemia en función del tiempo t (en días). Reescribiendo la ecuación, obtenemos: \(\frac{dN}{dt}=rN\left(1-\frac{\ln \left(N\right)}{\ln \left(\alpha \right)}\right)=rN\left(\frac{\ln \left(\alpha \right)-\ln \left(N\right)}{\ln \left(\alpha \right)}\right)=\frac{r}{\ln \left(\alpha \right)}N\cdot \ln \left(\frac{\alpha}{N}\right);\) mediante un cambio de variable \(\gamma =\frac{r}{\ln \left(\alpha \right)}\), podemos expresar: \(\frac{dN}{dt}=\gamma \cdot N\cdot \ln \left(\frac{\alpha}{N}\right),\) donde γ es la constante de proporcionalidad relacionada con la tasa de crecimiento de la epidemia. Por lo tanto, podemos presentar el problema de valor inicial como:
\[\frac{dN}{dt}=\gamma \cdot N\cdot \ln \left(\frac{\alpha}{N}\right),t\left(0\right)=t_{0},N\left(t_{0}\right){=N}_{0}, \tag{5}\]
donde t0 es un punto de referencia desde el inicio de la epidemia y N0 > 0 es el número de infecciones acumuladas al inicio de la infección en el tiempo t0. La solución analítica de la Ecuación diferencial (5) es la siguiente:
\[N\left(t\right)=N=\alpha \cdot e^{-\ln \left(\frac{\alpha}{N_{0}}\right)\cdot e^{-\gamma t}} \tag{6}\]
Realizando un cambio de variable adicional obtenemos: \(\beta =\ln \left(\frac{\alpha}{N_{0}}\right),\) donde β es un parámetro que controla la rapidez con que la población se aproxima a α. Cuanto mayor sea β, más rápido se aproximará la población al valor asintótico máximo de α. A partir de lo cual podemos expresar la función de Gompertz como:
\[N\left(t\right)=N=\alpha e^{-\beta e^{-\gamma t}} \tag{7}\]
La función obtenida en (7) será nuestra curva, a la cual ajustaremos los datos seleccionados para aplicar la misma metodología de determinación de parámetros que en el modelo logístico. El valor de α se calculó utilizando los valores medios descritos por Bronshtein y Semendiaev, mientras que los parámetros β y γ se obtuvieron mediante regresión lineal [30].
Aplicando el logaritmo natural a (7), obtuvimos:
\[\begin{gathered} N\ln \left(N\right)=\ln \alpha -\beta e^{-\gamma t} \\ \ln \left(N\right)-\ln \alpha =-\beta e^{-\gamma t} \end{gathered} \tag{8}\]
Realizando el siguiente cambio de variable, se convierte en:
\[\begin{gathered} y=\ln \left(N\right),c=\ln \alpha \\ y-c=-\beta e^{-\gamma t} \end{gathered} \tag{9}\]
Y al linealizar se obtiene:
\[\ln \left(y-c\right)=\ln \left(-\beta \right)-\gamma t \tag{10}\]
Si tenemos tres puntos que representan los datos epidemiológicos de infectados acumulados: (t1, y1), (t2, y2), (t3, y3), podemos estimar el parámetro c [30].
\[c=\frac{y_{1}y_{2}-y_{3}^{2}}{y_{1}+y_{2}-2y_{3}} \tag{11}\]
Revirtiendo los cambios de variable en (8) y tomando los mismos tres puntos considerados para el modelo logístico (t1, A), (t2, B), (t3, I), donde t3 = (t1 + t2)/2, que debemos reemplazar en (10), podemos calcular el valor de α:
\[\begin{gathered} \ln \alpha =\frac{\ln \left(A\right)\ln \left(B\right)-{\ln}^{2}\left(I\right)}{\ln \left(A\right)+\ln \left(B\right)-2\ln \left(I\right)} \\ \alpha =e^{\left(\frac{\ln \left(A\right)\ln \left(B\right)-{\ln}^{2}\left(I\right)}{\ln \left(A\right)+\ln \left(B\right)-2\ln \left(I\right)}\right)} \end{gathered} \tag{12}\]
Por otro lado, a partir de la Expresión (8) se tiene:
\[\ln \alpha -\ln \left(N\right)=\beta e^{-\gamma t} \tag{13}\]
\[\ln \left(\frac{\alpha}{N}\right)=\beta e^{-\gamma t} \tag{14}\]
Y al linealizar, obtenemos:
\[\ln \left(\ln \left(\frac{\alpha}{N}\right)\right)=\ln \beta -\gamma t \tag{15}\]
A partir de la segunda Ecuación de linealización (12), y aplicando el enfoque del método de mínimos cuadrados con la recta \(Y=a+bX\), donde \(Y=\ln \left(\ln \left(\frac{\alpha}{N}\right)\right),X=t,b=-\gamma\) y \(a=\ln (\beta )\), es posible encontrar los valores de los parámetros α y γ de la ecuación de Gompertz.
Para estimar los parámetros mediante regresión lineal, los datos se tabularon como pares ordenados (t, N), y los valores de \(Y=\ln \left(\ln \left(\frac{\alpha}{N}\right)\right)\) y X = t se calcularon directamente a partir de la recta estimada, los valores de \(\gamma =-b\) y \(a=\ln (\beta )\); entonces, \(\beta =e^{a}\).
Para estimar la tasa de casos de viruela símica en todas las poblaciones de estudio, se derivó la función de Gompertz y se obtuvo su ecuación diferencial:
\[\frac{dN}{dt}=\alpha \beta \gamma e^{-\beta e^{-\gamma t}-\gamma t} \tag{16}\]
Con el fin de determinar el valor crítico (tc), que representa el valor máximo de los casos diarios observados en los datos, se calculó la segunda derivada, que tiene la forma:
\[\frac{d^{2}N}{dt^{2}}=\alpha \beta \gamma e^{-\beta e^{-\gamma t}-\gamma t}\left(\beta \gamma e^{-\gamma t}-\gamma \right) \tag{17}\]
Además, la Expresión (13) se igualó a cero, lo que geométricamente representa la coordenada temporal del punto de inflexión de la curva de Gompertz de los casos acumulados (datos), obteniéndose:
\[t_{c}=\frac{\ln \left(\beta \right)}{\gamma} \tag{18}\]
Si el valor obtenido no es un número entero, se selecciona el valor entero siguiente (mediante redondeo), y luego este valor sirve como referencia para encontrar la fecha y el valor máximo de la tasa diaria de infección en los datos.
2.3. Análisis estadístico
En el lenguaje de programación R (versión 4.2.3), utilizamos paquetes adicionales dentro del entorno de desarrollo integrado (IDE) R Studio, concretamente Nortest y Stats. El paquete Nortest comprende un conjunto de funciones de R diseñadas para ejecutar pruebas de normalidad, mientras que el paquete Stats abarca una variedad de funciones de R dedicadas a pruebas estadísticas y al análisis integral de datos. Además, para la validación de los modelos, empleamos el paquete lmtest para realizar la prueba de Breusch–Pagan.
2.3.1. Pruebas de normalidad para la variable casos
La variable Casos totales de viruela símica se sometió a un proceso de segmentación para el análisis estadístico, se estratificó según los respectivos grupos poblacionales en estudio y se categorizó por región geográfica (es decir, Mundo, Europa, América del Norte, América del Sur). Esta segmentación se realizó para determinar las pruebas estadísticas más apropiadas que se aplicarían posteriormente al conjunto de datos, tanto para el modelo logístico como para el modelo de Gompertz.
Se realizaron pruebas de hipótesis para evaluar la normalidad de los datos dentro de cada grupo. Estas pruebas se diseñaron para determinar si la distribución de los datos en cada grupo se ajusta a una distribución normal. El resultado de estas pruebas se representa mediante un valor p, que cuantifica la probabilidad de observar una distribución de datos similar a la normalidad o que se aleje aún más de ella. Esto se lleva a cabo asumiendo que la hipótesis nula postula que la variable se ajusta a una distribución perfectamente normal en la población [31]. En los casos en que el valor p supera el nivel de significancia predeterminado, no existe evidencia suficiente para rechazar la hipótesis nula. Esto sugiere que la variable sigue una distribución normal [31].
Se empleó la prueba de Kolmogorov–Smirnov porque el conjunto de datos de cada grupo poblacional superaba un tamaño muestral de N > 50. Esta prueba utilizó la función lillie—test del paquete Nortest para cada población.
Prueba de hipótesis:
H0: Los datos siguen una distribución normal.
H1: Los datos no siguen una distribución normal.
Se estableció un nivel de significancia (α) de 0.05.
2.3.2. Prueba de Kruskal–Wallis para la velocidad de casos de viruela símica
Con base en los resultados de la prueba de normalidad, se realizó la prueba de Kruskal–Wallis tanto para el modelo logístico como para el modelo de Gompertz. Esta prueba no paramétrica evalúa las diferencias entre tres o más grupos independientes muestreados a partir de una única variable continua con distribución no normal [32]. Para realizar la prueba, se utilizó la función Kruskal.test (case velocity~geographic region, data = monkeypox).
Prueba de hipótesis:
H0: No existen diferencias significativas entre las medias de las poblaciones en estudio.
H1: Al menos una media difiere significativamente de las demás poblaciones.
Se estableció un nivel de significancia (α) de 0.05.
2.3.3. Prueba post hoc: prueba de Wilcoxon por pares para la velocidad de casos de viruela símica
Con base en los resultados de la prueba de Kruskal–Wallis, se realizó una prueba post hoc para determinar qué medias presentaban diferencias significativas, tanto para el modelo logístico como para el modelo de Gompertz. Como prueba post hoc de la prueba de Kruskal–Wallis, se suelen realizar múltiples comparaciones no paramétricas por pares, a menudo mediante la prueba de Wilcoxon por pares [33]. Para realizar la prueba, se empleó la función pairwise. wilcox.test (case velocity~geographic region, data = monkeypox).
Prueba de hipótesis para cada combinación:
H0: No existen diferencias significativas entre las medias de las poblaciones X e Y.
H1: Existen diferencias significativas entre las poblaciones X e Y.
X e Y representan cualquier par de poblaciones analizadas mediante la prueba de Wilcoxon.
Se estableció un nivel de significancia (α) de 0.05.
2.3.4. Análisis de regresión lineal múltiple para la velocidad de casos de viruela símica
Además, se realizó una prueba de regresión lineal múltiple para evaluar el efecto de cada región geográfica sobre la velocidad de casos de viruela símica y para validar las conclusiones obtenidas a partir de las pruebas de Kruskal–Wallis y de Wilcoxon para el modelo logístico y el modelo de Gompertz. El tiempo y la región geográfica se utilizaron como variables independientes para determinar si son explicativas en el modelo de regresión lineal múltiple [34]; en otras palabras, si afectan la velocidad de casos de viruela símica. Para realizar la prueba se utilizó la función lm(case velocity~time + geographic region, data = monkeypox).
Prueba de hipótesis para cada región geográfica:
H0: La región geográfica no afecta la velocidad de casos de viruela símica.
H1: La región geográfica afecta la velocidad de casos de viruela símica.
Las regiones geográficas son Europa, América del Norte y América del Sur.
Se estableció un nivel de significancia (α) de 0.05.
2.3.5. Comparación de la variable modelada con los datos reales
Para evaluar el grado en que los modelos matemáticos se ajustan a los datos empíricos, calculamos el coeficiente de determinación, denotado como R2, según lo expuesto por Schober et al. [35], tanto para el modelo logístico como para el modelo de Gompertz. R2 indica la proporción de la variabilidad total observada en la variable de respuesta que el modelo puede explicar. Un valor de R2 más alto, cercano a 1, indica un ajuste sólido del modelo, lo que implica que el modelo puede dar cuenta de una parte sustancial de la variabilidad de la variable de respuesta. Por el contrario, un valor de R2 más bajo, cercano a 0, implica que el modelo explica de forma inadecuada la variabilidad inherente a la variable de respuesta.
Para calcular R2, empleamos la siguiente fórmula matemática: R2 = 1 − (SSR/SST), donde S.S.R. (suma de cuadrados de los residuos) representa la suma de las diferencias al cuadrado entre los valores predichos por el modelo y los valores reales de la variable de respuesta. A su vez, S.S.T. (suma total de cuadrados) representa la suma de las diferencias al cuadrado entre los valores reales de la variable de respuesta y su media.
Además, se utilizó el criterio de información de Akaike (A.I.C.) como segunda métrica para analizar la bondad de ajuste de nuestros modelos a los datos reales. Este criterio evalúa la calidad del ajuste de los modelos considerando el número de parámetros utilizados en cada modelo y el número de observaciones realizadas, y elige como mejor modelo aquel que minimiza el índice A.I.C. Este índice se calcula como [18]:
\[AIC=n\cdot \ln \left(\frac{{\sum}_{i=1}^{n}{\left(y_{i}-{\hat{y}}_{i}\right)}^{2}}{n}\right)+2\cdot p \tag{19}\]
donde n es la cantidad de datos analizados (en nuestro caso, 365 días), p es el número de parámetros de nuestro modelo (p = 3, para ambos modelos), y la diferencia de los residuos al cuadrado se da entre los valores observados (datos reales) yi y los valores predichos por cada uno de los modelos ŷi. Este índice se estimó tras tabular los datos acumulados de la población infectada (datos reales y datos estimados a partir de los modelos logístico y de Gompertz). Se estimaron tres parámetros para el modelo logístico (M, A, k) y para el modelo de Gompertz (α, β, γ).
2.4. Estimación del número reproductivo básico
El número reproductivo básico es un parámetro epidemiológico relevante al inicio de un brote epidémico; indica el número de infecciones secundarias que pueden producirse cuando un individuo infectado está en contacto con una población susceptible a la infección. Su interpretación epidemiológica significa que, para \(R_{0}\) > 1, la enfermedad se propagará, mientras que para \(R_{0}\) < 1, el brote tenderá a autolimitarse. Conscientes de la importancia de este parámetro epidemiológico, empleamos dos enfoques diferentes para estimarlo a partir de los datos obtenidos con los dos modelos matemáticos del presente estudio. Esto se realizó para evaluar cuál de estos enfoques podría reflejar mejor un escenario real. En nuestro caso, estimamos los valores de \(R_{0}\) para ambos modelos mediante dos métodos empíricos. Para aplicarlos, necesitamos conocer el tiempo infeccioso y el periodo de incubación (periodo preinfeccioso) de la enfermedad. Luego, estimamos el valor de \(R_{0}\) mediante la siguiente fórmula [36]:
\[R_{0}=(1+r\cdot D)(1+r\cdot D^{'}) \tag{20}\]
donde r es la tasa de crecimiento de la epidemia, \(D\) es el tiempo promedio de infección y \(D^{'}\) es el tiempo promedio de incubación. Este enfoque es válido cuando asumimos que \(D\) y \(D^{'}\) siguen una distribución exponencial, y cuando \(D\) y \(D^{'}\) son relativamente cortos en comparación entre sí.
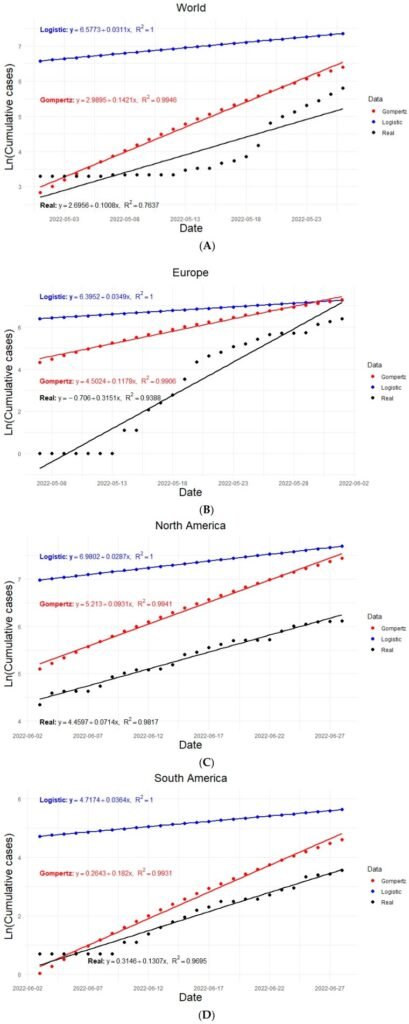
La primera metodología, presentada en [36], es un método gráfico mediante el cual tabulamos los primeros 26 días de la epidemia (considerando el comportamiento cuasiexponencial en las etapas iniciales del brote epidémico) con respecto al logaritmo natural de los datos acumulados y, mediante regresión lineal, estimamos la tasa de crecimiento de la epidemia “r” (crecimiento intrínseco de la población infectada para cada modelo) como la pendiente de la recta. Los valores obtenidos para r se utilizan luego en la Ecuación (14).
La segunda metodología utilizada es un enfoque analítico, ya que, al inicio de una epidemia, el número acumulado de personas infectadas es mucho menor que su capacidad máxima, N ≪ Nmax; por lo tanto, es posible aproximar una función logística o de Gompertz a un crecimiento exponencial.
En el caso de la ecuación diferencial logística \(\frac{dQ}{dt}=kQ\left(1-\frac{Q}{M}\right)\), cuando \(Q<M\), \(Q/M\) tiende a cero y, por lo tanto, \(dQ/dt=rQ\), cuya solución es \(Q(t)=Q\left(0\right)e^{kt}\), donde \(r_{logistic}=k\) es la tasa de crecimiento intrínseca de la epidemia “r”.
Para el modelo de Gompertz \(\frac{dN}{dt}=\gamma Nln\left(\frac{\alpha}{N}\right)\), podemos aproximar \(\ln (\alpha /N)\) mediante una serie de Taylor: \(\ln (\alpha /N)=\ln (\alpha )-N/\alpha\). Así, \(dN/dt=\gamma N(\ln (\alpha )-N/\alpha )\), y cuando \(N<\alpha\), entonces \(dN/dt=\gamma \ln (\alpha )N\). La solución es \(N(t)=N\left(0\right)e^{\gamma \ln \left(\alpha \right)t}\), donde \(r_{gompertz}=\gamma \ln (\alpha )=r\). Los valores obtenidos para r se utilizan luego en la Ecuación (14).
3. Resultados
3.1. Panorama epidemiológico de la viruela símica
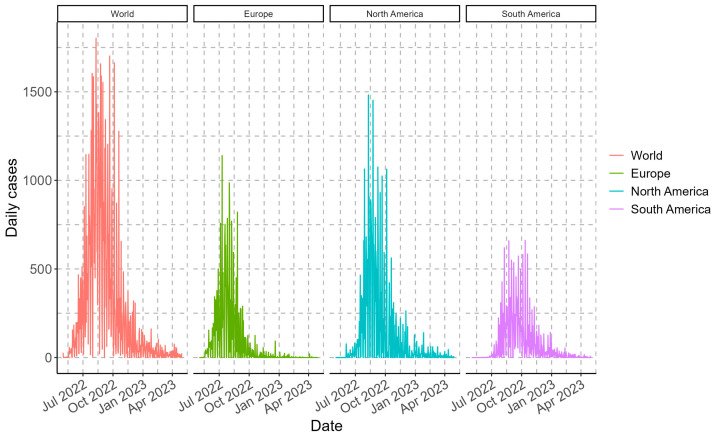
El brote de viruela símica que comenzó en mayo de 2022 acumuló más de 87 mil casos en todo el mundo hasta la fecha de análisis de este estudio (30 de abril de 2023). A nivel mundial, los valores máximos de casos diarios se registraron entre el 24 de agosto y el 5 de octubre de 2022, con más de 1650 casos por día. En el caso de los continentes, los valores máximos de casos se registraron en 2022, entre el 10 de julio y el 2 de agosto (para Europa), del 10 al 24 de agosto (para América del Norte) y entre el 9 de agosto y el 12 de octubre (para América del Sur), con valores máximos superiores a 860, 1450 y 620 casos por día, respectivamente (Figura 1). En consecuencia, los valores de casos acumulados a la fecha de corte fueron de más de 87.2 mil (Mundo), 25.6 mil (Europa), 36.9 mil (América del Norte) y 22.3 mil (América del Sur).
3.2. Modelamiento matemático
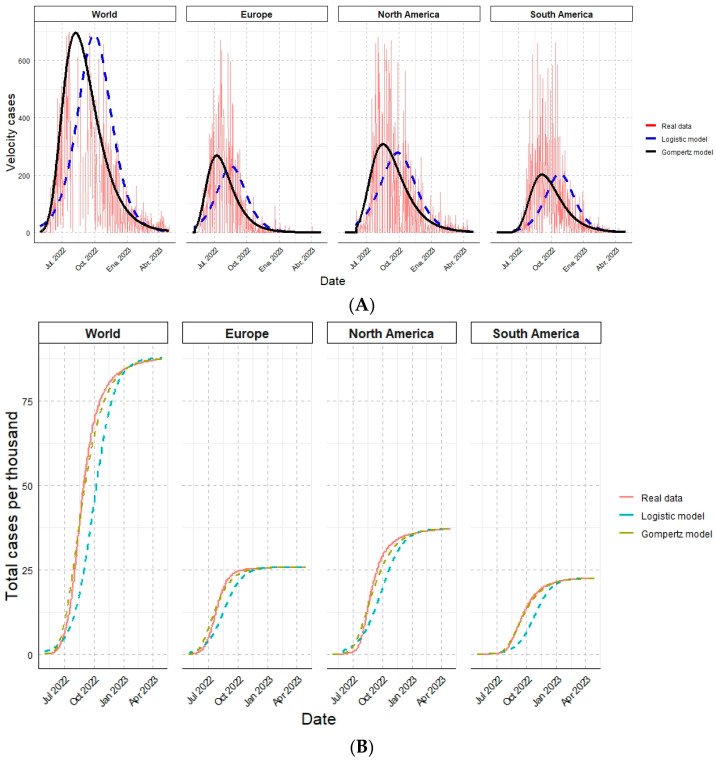
Los modelos matemáticos (logístico y de Gompertz) se aplicaron de forma independiente a cada región (Mundo, Europa, América del Norte y América del Sur). Los resultados obtenidos se muestran a continuación (Tabla 1):
| Modelo | Parámetros | Mundo | Europa | América del Norte | América del Sur |
|---|---|---|---|---|---|
| Logístico | Coeficiente de determinación R2 | 0.8885 | 0.8720 | 0.9023 | 0.8774 |
| Logístico | Tiempo crítico tc (días) | 152 | 108 | 117 | 144 |
| Logístico | Fecha en tc | 30 de septiembre de 2022 | 23 de agosto de 2022 | 28 de septiembre de 2022 | 25 de octubre de 2022 |
| Logístico | Nmax en tc | 43,648 | 13,926 | 18,515 | 11,160 |
| Logístico | Mayor tasa de contagio (personas/día) | 690 | 230 | 278 | 206 |
| Gompertz | Coeficiente de determinación R2 | 0.9952 | 0.9881 | 0.9900 | 0.9988 |
| Gompertz | Tiempo crítico tc (días) | 100 | 62 | 75 | 94 |
| Gompertz | Fecha en tc | 9 de agosto de 2022 | 8 de julio de 2022 | 17 de agosto de 2022 | 5 de septiembre de 2022 |
| Gompertz | Nmax en tc | 32,656 | 9463 | 13,699 | 8264 |
| Gompertz | Mayor tasa de contagio (personas/día) | 696 | 268 | 308 | 202 |
Finalmente, los resultados estimados por el modelo logístico y el modelo de Gompertz se compararon con los datos reales y se observaron de manera simultánea. Se muestran la tasa de contagio de casos de viruela símica en cada región geográfica analizada (Figura 2A) y los casos acumulados (Figura 2B):
3.3. Análisis estadístico
3.3.1. Pruebas de normalidad para la variable casos
Los datos de las poblaciones (Mundo, Europa, América del Norte y América del Sur) correspondientes a los datos modelados no presentaron una distribución normal. El valor p de cada población (Tabla 2) fue menor que 0.05, lo que indica que se rechaza la hipótesis nula y establece que los datos no siguen una distribución normal.
| Modelo | Región geográfica | Valor p | Contraste de hipótesis | Interpretación |
|---|---|---|---|---|
| Logístico | Mundo | 6.39 × 10⁻³⁴ | Se rechaza H0 | Distribución no normal |
| Logístico | Europa | 4.11 × 10−60 | Se rechaza H0 | Distribución no normal |
| Logístico | América del Norte | 1.08 × 10⁻³² | Se rechaza H0 | Distribución no normal |
| Logístico | América del Sur | 1.68 × 10⁻³⁰ | Se rechaza H0 | Distribución no normal |
| Gompertz | Mundo | 1.94 × 10−39 | Se rechaza H0 | Distribución no normal |
| Gompertz | Europa | 3.77 × 10−98 | Se rechaza H0 | Distribución no normal |
| Gompertz | América del Norte | 5.37 × 10−39 | Se rechaza H0 | Distribución no normal |
| Gompertz | América del Sur | 2.87 × 10−36 | Se rechaza H0 | Distribución no normal |
3.3.2. Prueba de Kruskal–Wallis para la velocidad de casos de viruela símica
Se realizó la prueba de comparación de medias de Kruskal–Wallis para evaluar si existen diferencias significativas en las velocidades de casos de viruela símica entre las regiones geográficas para el modelo logístico y el modelo de Gompertz. Los valores p obtenidos fueron 1.55 × 10−41 y 2.71 × 10−42, respectivamente, por lo que se rechaza la hipótesis nula, lo que indica que existe al menos una población cuya media difiere significativamente de las medias de las demás poblaciones en estudio, tanto para el modelo logístico como para el modelo de Gompertz.
3.3.3. Prueba post hoc: prueba de Wilcoxon por pares para la velocidad de casos de viruela símica
Se realizó la prueba post hoc, la prueba de Wilcoxon por pares, para evaluar qué media o medias presentan diferencias significativas respecto de las demás poblaciones, tanto para el modelo logístico como para el modelo de Gompertz. Los valores p obtenidos (Tabla 3) fueron en su mayoría menores que 0.05, por lo que se rechaza la hipótesis nula, lo que indica diferencias significativas entre las siguientes poblaciones: Mundo y Europa, Mundo y América del Norte, Mundo y América del Sur, Europa y América del Norte, América del Norte y América del Sur, tanto para el modelo logístico como para el modelo de Gompertz. Sin embargo, las poblaciones de Europa y América del Sur presentan un valor p de 0.894 para el modelo logístico y de 0.546 para el modelo de Gompertz, que es mayor que 0.05; por lo tanto, se acepta la hipótesis nula, lo que indica que no existen diferencias significativas entre las medias de ambas poblaciones para ambos modelos.
| Modelo | Región geográfica | Mundo | Europa | América del Norte |
|---|---|---|---|---|
| Logístico | Europa | 3.71 × 10⁻³⁰ | - | - |
| Logístico | América del Norte | 3.92 × 10⁻¹⁵ | 8.65 × 10⁻⁶ | - |
| Logístico | América del Sur | 6.23 × 10⁻³² | 0.894 | 1.73 × 10⁻⁶ |
| Gompertz | Europa | 3.48 × 10⁻³² | - | - |
| Gompertz | América del Norte | 1.71 × 10⁻¹⁵ | 2.93 × 10⁻⁶ | - |
| Gompertz | América del Sur | 5.17 × 10⁻³¹ | 0.546 | 5.15 × 10⁻⁶ |
3.3.4. Análisis de regresión lineal múltiple para la velocidad de casos de viruela símica
Se realizó la prueba de regresión lineal múltiple para determinar y validar si la región geográfica influye en la velocidad de casos de viruela símica, tanto para el modelo logístico como para el modelo de Gompertz. Los valores p obtenidos para cada región geográfica (Tabla 4) fueron menores que 0.05, por lo que se rechaza la hipótesis nula, lo que indica que existe un efecto de la región geográfica sobre la velocidad de casos de viruela símica, lo cual respalda los resultados obtenidos en las pruebas de Kruskal–Wallis y de Wilcoxon.
| Modelo | Región geográfica | Valor p | Contraste de hipótesis | Interpretación |
|---|---|---|---|---|
| Logístico | Mundo | <2.2 × 10⁻¹⁶ | Se rechaza H0 | Efecto significativo |
| Logístico | Europa | 0.001295 | Se rechaza H0 | Efecto significativo |
| Logístico | América del Norte | 0.000108 | Se rechaza H0 | Efecto significativo |
| Logístico | América del Sur | 9.74 × 10⁻⁷ | Se rechaza H0 | Efecto significativo |
| Gompertz | Mundo | <2.2 × 10⁻¹⁶ | Se rechaza H0 | Efecto significativo |
| Gompertz | Europa | 0.000314 | Se rechaza H0 | Efecto significativo |
| Gompertz | América del Norte | <2.2 × 10⁻¹⁶ | Se rechaza H0 | Efecto significativo |
| Gompertz | América del Sur | <2.2 × 10⁻¹⁶ | Se rechaza H0 | Efecto significativo |
3.3.5. Comparación de la variable modelada con los datos reales
La comparación de los datos reales con los datos obtenidos del modelo matemático para la velocidad de casos de viruela símica por región geográfica arrojó coeficientes de determinación (R2) tanto para el modelo logístico como para el modelo de Gompertz (Tabla 5):
| Región geográfica | \(R^{2}\)–Logístico | \(R^{2}\)–Gompertz | A.I.C.–Logístico | A.I.C.–Gompertz |
|---|---|---|---|---|
| Mundo | 0.8885 | 0.9952 | 6836.8260 | 5669.1384 |
| Europa | 0.8720 | 0.9881 | 5783.6794 | 5066.7892 |
| América del Norte | 0.9023 | 0.9900 | 6087.4334 | 5336.7998 |
| América del Sur | 0.8774 | 0.9988 | 5869.6060 | 4229.3746 |
Estos valores indican que ambos modelos matemáticos representan sólidamente los datos reales para todas las variables. Sin embargo, es fundamental destacar que el modelo de Gompertz sería mejor, ya que los coeficientes obtenidos son mayores que los del modelo logístico y cercanos a uno. En particular, el modelo de Gompertz aplicado a América del Sur mostró el valor más alto de todos (0.9988).
Los resultados de los análisis de ajuste mediante el cálculo del coeficiente de determinación y del criterio de información de Akaike (A.I.C.) también se muestran en la Tabla 5:
Un coeficiente de determinación más alto y un valor más bajo del índice A.I.C. para el modelo de Gompertz indican un mejor ajuste a nuestros datos que el modelo logístico.
3.4. Estimación del número reproductivo básico
Gráficamente, fue posible estimar las tasas de crecimiento de la epidemia para cada modelo en cada región (\(r_{logistic}\), \(r_{gompertz}\)). Las rectas de regresión estimadas se muestran en la Figura 3. Los valores de crecimiento de la epidemia se consideran como las pendientes de las rectas de regresión en cada caso; por ejemplo, para el mundo: \(r_{logistic}=0.0311\) y \(r_{gompertz}=0.1421\).
Por su parte, el enfoque analítico también encontró valores de (\(r_{logistic}=k\), \(r_{gompertz}=\gamma \cdot \ln (\alpha )\)), los cuales se muestran en la Tabla 6:
| Región geográfica | Gráfico | |||
|---|---|---|---|---|
| \(r_{logistic}\) | Gráfico | |||
| \(r_{gompertz}\) | Analítico | |||
| \(r_{logistic}\) | Analítico | |||
| \(r_{gompertz}\) | ||||
| Mundo | 0.0311 | 0.1421 | 0.0315 | 0.2458 |
| Europa | 0.0349 | 0.1179 | 0.0362 | 0.2893 |
| América del Norte | 0.0287 | 0.0931 | 0.0300 | 0.2377 |
| América del Sur | 0.0364 | 0.1820 | 0.0367 | 0.2454 |
Los cálculos de \(R_{0}\) asumieron que el periodo preinfeccioso es el periodo de incubación promedio, \(D^{'}=9.1\) días, mientras que el periodo infeccioso es el periodo de generación medio, \(D=12.5\) días [37]. Por ejemplo, para calcular \(R_{0}\) para el mundo con el \(r_{logistic}\) obtenido mediante el método gráfico: \(R_{0}=\left(1+0.0311\times 9.1\right)\times \left(1+0.0311\times 12.5\right)=1.78178\). Los valores de \(R_{0}\) estimados con ambas metodologías se muestran en la Tabla 7.
| Región geográfica | Gráfico | |||
|---|---|---|---|---|
| Logístico \(R_{0}\) | Gráfico | |||
| Gompertz \(R_{0}\) | Analítico | |||
| Logístico \(R_{0}\) | Analítico | |||
| Gompertz \(R_{0}\) | ||||
| Mundo | 1.78178 | 6.36625 | 1.79327 | 13.18179 |
| Europa | 1.89239 | 5.12781 | 1.93098 | 16.76913 |
| América del Norte | 1.71361 | 3.99690 | 1.75038 | 12.56134 |
| América del Sur | 1.93695 | 8.69906 | 1.94593 | 13.15080 |
4. Discusión
Este estudio se realizó un año después del brote epidémico de HMPX en diferentes regiones geográficas y, mediante modelamiento matemático comparativo, se evaluó la dinámica epidemiológica de los casos.
Los poxvirus son patógenos estrechamente vinculados a la historia de la humanidad [38, 39]. A pesar de evolucionar lentamente debido a su gran genoma de ADN de doble cadena, los poxvirus son altamente adaptables y pueden experimentar alteraciones genotípicas y fenotípicas para adaptarse y prosperar en nuevos hospedadores [40–42]. Además, su arquitectura genómica puede moldear su evolución y, en ocasiones, interactuar con otros virus [41, 43].
El brote de HMPX presenta algunas características peculiares e intrigantes en el campo de la epidemiología viral. En primer lugar, se trata de una epidemia dentro de una pandemia en curso (COVID-19) causada por el virus SARS-CoV-2 [44, 45]. En segundo lugar, a pesar de su asociación principal con los primates, puede infectar a diversas especies animales y al ser humano [2]. A diferencia de los brotes en humanos de décadas pasadas [4], el brote epidémico de 2022 constituye el primer caso significativo de dispersión global, que afectó a varios países y continentes [5]. En tercer lugar, la suspensión global de los programas de vacunación contra los ortopoxvirus (es decir, la vacuna con el virus vaccinia) tras la erradicación de la viruela se correlaciona potencialmente con la reemergencia de este virus [7], lo que implica la necesidad de revisar las estrategias de vacunación globales para prevenir o controlar nuevos brotes de HMPX.
Los modelos matemáticos desempeñan un papel fundamental en el análisis anticipatorio de la propagación de las enfermedades infecciosas, al proporcionar una base de información crucial para los tomadores de decisiones en salud pública y en políticas gubernamentales. En el presente estudio, además de abordar diferentes datos, escalas y espacios geográficos, buscamos incluir enfoques comparativos y metodologías novedosas. Si bien muchos estudios epidemiológicos han desarrollado modelos matemáticos compartimentales para comprender la dinámica infecciosa de la HMPX [20–23, 46], no son muchos los estudios que han intentado explicar la dinámica mediante una sola ecuación diferencial para la población infectada en la HMPX. En este sentido, nuestro estudio ofrece un modelo de aproximación primaria para la HMPX con dos modelos matemáticos amplios y bien estudiados, a saber, el modelo logístico y el modelo de Gompertz. Estos modelos han demostrado ser útiles para describir la dinámica infecciosa en muchos casos [18, 19]. Además, implementamos la metodología presentada por Bronshtein y Semendiaev [30] para el ajuste de los datos mediante tres puntos en el modelo de Gompertz. Asimismo, calculamos \(R_{0}\) mediante un enfoque empírico y analítico con datos reales en modelos basados en una sola ecuación diferencial ordinaria.
Realizar el modelamiento matemático de los casos de HMPX con dos modelos de forma simultánea nos permite establecer comparaciones para determinar cuál presenta el mejor ajuste. Así, con base en los valores del coeficiente de determinación, el modelo de Gompertz se ajusta mejor a nuestros datos que el modelo logístico. Esto se debe a que, en los datos diarios (velocidad de casos), se observa una distribución ligeramente asimétrica, con las mayores tasas de contagio al inicio de la epidemia. Geométricamente, esto significa que el punto de inflexión (velocidad máxima, correspondiente al número máximo de infecciones diarias registradas en los datos) ocurre antes del punto medio de la curva de infecciones acumuladas.
Esta característica y un mejor ajuste a datos con estas propiedades se han determinado en varios estudios epidemiológicos en los que también se comparan modelos basados en ecuaciones diferenciales [18, 19]. Aunque existen formas equivalentes de escribir la función de Gompertz con tres parámetros, se recomienda utilizar la forma en la que la coordenada temporal se presenta explícitamente en el punto de inflexión \(t_{c}\) [14, 24]. La metodología empleada en este estudio nos permite estimar el tiempo crítico \(t_{c}\) a partir de la función presentada. También nos permite destacar la relación entre las tasas de propagación de la epidemia \(r\) (tasa de infección, tasa de crecimiento epidémico o tasa de crecimiento poblacional de los infectados en cada región), la cantidad acumulada máxima \(\alpha\) y el número inicial de infectados \(N_{0}\) con respecto a los parámetros de la curva de Gompertz. Determinamos que \(\beta =\ln \left(\frac{\alpha}{N_{0}}\right)\) y \(\gamma =\frac{r}{\ln \left(\alpha \right)}\). En el caso de \(\beta\), este parámetro controla la rapidez con la que, dada una cantidad inicial de infecciones acumuladas, estas se aproximan a su cantidad acumulada máxima. Cuanto mayor sea la diferencia entre \(\alpha\) y \(N_{0}\), más rápido crecerá la población infectada. Esto se deduce tomando el límite en la Ecuación (7): \(\lim_{\beta \rightarrow \infty}N\left(t\right)=\lim_{\beta \rightarrow \infty}\alpha e^{-\beta e^{-\gamma t}}=0\). Por lo tanto, en la Ecuación (5): \(\gamma \cdot N\cdot \ln \left(\frac{\alpha}{N}\right)\rightarrow 0\), cuando \(N\rightarrow \alpha\). Por otro lado, para \(\gamma\), podemos calcular la tasa de crecimiento intrínseca de la población infectada como \(r=\gamma \ln \left(\alpha \right).\) Finalmente, podemos calcular \(R_{0}\), uno de los parámetros más relevantes en la epidemiología viral.
En el modelo de Gompertz, tomar el logaritmo de la ecuación da lugar a una ecuación no lineal en la escala logarítmica, dada la presencia de la función logaritmo natural \(\ln (\alpha /N)\). En consecuencia, la relación entre la pendiente de la regresión lineal y \(r_{gompertz}\) no es directa. No puede obtenerse de inmediato a partir de la pendiente de la recta de regresión en la escala logarítmica. En cambio, cuando tomamos el logaritmo de la ecuación del modelo logístico, surge una relación lineal en la escala logarítmica. Esto permite que la pendiente de la regresión lineal proporcione directamente una estimación de la tasa de crecimiento intrínseca (\(r_{logistic}\)). También observamos discrepancias al determinar \(r_{gompertz}\) mediante las dos metodologías. Estas discrepancias se originan en la estructura matemática de la función de Gompertz, que no permite determinar la tasa de crecimiento mediante un solo logaritmo. Además, este valor (la pendiente de las rectas de regresión) es sensible a la cantidad de datos que se asume como crecimiento exponencial. Como resultado de lo anterior, se observan discrepancias significativas en los valores de \(R_{0}\) estimados por el modelo de Gompertz en cada método empleado para hallar \(r_{gompertz}\). En cualquier caso, es esencial mencionar que el \(R_{0}\) calculado a partir del modelo de Gompertz es mayor que el calculado con el modelo logístico. Al inicio de un brote, siempre hay escasez de datos porque la enfermedad es desconocida. El modelo de Gompertz, al ser asimétrico, asciende más rápidamente, lo que conduce a un \(R_{0}\) que siempre es mayor que el del modelo logístico. Sin embargo, estas estimaciones de \(R_{0}\) deben considerarse referencias empíricas iniciales e imprecisas. Dependen de factores como los periodos de preinfección e infección, y del método de cálculo de la tasa de crecimiento del brote, que pueden variar significativamente en cada región y población de estudio. Además, los valores de los periodos de infección y preinfección (incubación) utilizados en nuestros cálculos representan solo valores promedio dentro de un rango amplio. En la literatura pueden encontrarse distintos rangos de valores [37, 46, 47].
Para el modelo logístico, observamos que, al estimar \(r_{logistic}\) con una población \(Q\) pequeña en comparación con su capacidad de carga M, su crecimiento se asemeja a un crecimiento exponencial y la tasa de crecimiento es aproximadamente constante. Sin embargo, a medida que la población se aproxima a la capacidad de carga (\(Q\) se aproxima a \(M\)), el crecimiento se ralentiza y tiende a cero, lo que se conoce también como el efecto de autorregulación de la capacidad de carga. Por lo tanto, la ecuación logística captura tanto el crecimiento exponencial inicial como la estabilización final de la población a medida que se aproxima a \(M\). No obstante, es imperativo reconocer las limitaciones inherentes de los modelos logísticos, ya que asumen una población uniforme y una vulnerabilidad equivalente a la infección.
Ambos métodos de estimación de \(r_{gompertz}\) son válidos únicamente para valores pequeños de \(N\) y para una fase inicial de crecimiento. A medida que la población crece y se aproxima a la capacidad de carga (\(\alpha\)), el comportamiento de la ecuación de Gompertz difiere significativamente del crecimiento exponencial. Por lo tanto, este enfoque describe adecuadamente el comportamiento inicial, pero no representa el comportamiento completo del modelo de Gompertz.
Debido a las metodologías empleadas, los valores de \(R_{0}\) deben tomarse como ilustrativos y se presentan para mostrar cuantitativamente que \(R_{0}>1\) en cualquier caso, y que el brote epidémico, en general, ocurre más rápido según el modelo de Gompertz, que se ajusta mejor a los datos observados en la Figura 3. Aquí observamos que las pendientes encontradas son más cercanas a las halladas en los datos reales. Sin embargo, el modelo logístico estimó valores consistentes de \(R_{0}\) (mediante las aproximaciones gráfica y analítica), y estos fueron más cercanos a los observados al inicio de la epidemia [48].
Aunque las diferencias mencionadas entre ambos modelos influyeron en las estimaciones tempranas (y mejor ajustadas) de tc y de la mayor tasa de contagio para el modelo de Gompertz, ambos modelos aproximaron de manera válida el comportamiento epidemiológico de la HMPX y la forma en que la región geográfica afecta su velocidad de contagio. Esto nos permitió observar diferencias significativas en las velocidades de casos de viruela símica entre cada región geográfica en ambos modelos, excepto en la evaluación por pares entre Europa y América del Sur, que mostraron comportamientos similares (una curva más aplanada) en comparación con América del Norte y el mundo, que presentaron curvas más pronunciadas. Todas estas estimaciones matemáticas con relación epidemiológica nos permiten comprender mejor la dinámica de la HMPX y sus posibles implicaciones preventivas y clínicas.
Históricamente, la viruela símica era una enfermedad autolimitada. Sin embargo, el brote reciente ha evidenciado un cambio en sus patrones de transmisión, especialmente entre hombres que tienen sexo con hombres (MSM) [45]. Las manifestaciones clínicas han evolucionado, y los pacientes presentan ahora síntomas inusuales como proctitis, amigdalitis y parafimosis relacionada con edema peneano [49]. En medio de esta crisis sanitaria, existe un aspecto alentador en la similitud antigénica entre el virus de la viruela y el virus de la viruela símica, que permite el uso de las vacunas contra la viruela como medida preventiva contra la viruela símica [50].
Las estrategias de manejo y prevención de la viruela símica se basan en medidas diseñadas inicialmente para la protección contra la viruela. La viruela es la única enfermedad infecciosa que la humanidad ha logrado erradicar, y las estrategias empleadas podrían aplicarse a la viruela símica [51]. Sin embargo, el desafío radica en comprender el virus de la viruela símica y sus patrones de transmisión, y en desarrollar estrategias eficaces de tratamiento y prevención [52].
La reciente epidemia de viruela símica ha puesto de relieve la habilidad del virus para evadir el sistema inmunitario del hospedador. El virus ha desarrollado estrategias para controlar la activación de las células T antivirales y la producción de citocinas inflamatorias. Este mecanismo de evasión inmunitaria es crucial para la propagación eficiente del virus dentro del hospedador infectado [53]. Al igual que otros poxvirus, el virus de la viruela símica ha desarrollado múltiples mecanismos para evadir el sistema inmunitario del hospedador [54]. La suspensión de la vacunación contra la viruela, que proporciona protección cruzada contra la viruela símica, puede haber contribuido de manera significativa al brote de 2022 [7]. Un estudio sobre la vacuna Jynneos y la infección por viruela símica profundiza en las respuestas inmunitarias inducidas, y reporta menos efectos secundarios que las vacunas anteriores contra la viruela [55]. Este estudio representa un ejemplo de las posibles mejoras en las estrategias de vacunación contra la HMPX y resalta la necesidad de revisar los programas de inmunización actuales.
Con respecto a la información mencionada, los modelos utilizados en el presente estudio pueden considerar el factor de vacunación como un coeficiente derivado de los valores empíricos de eficacia de una posible vacuna autorizada contra la HMPX, o pueden emplearse para simular diversos escenarios de vacunación. Alternativamente, el factor de vacunación podría simularse mediante la implementación de modelos de orden fraccionario o compartimentales, como se ha publicado para otras enfermedades virales [56–58]. El modelo logístico es más adecuado para las etapas inicial e intermedia de una epidemia, al ofrecer una curva simétrica en forma de S que representa una propagación viral constante y una capacidad de carga. En cambio, el modelo de Gompertz destaca en las etapas posteriores, al capturar la ralentización de la propagación de la enfermedad con su curva asimétrica en forma de S, influida por factores como la inmunidad. En consecuencia, puede deducirse que la elección del modelo depende de la fase de la epidemia, de la naturaleza de la propagación de la enfermedad y del ajuste a los datos. Ambos modelos comparten una función sigmoidea y acotada, pero el punto de inflexión del modelo logístico genera una curva simétrica, mientras que el punto de inflexión del modelo de Gompertz conduce a una asimetría. La selección del modelo depende de las características de los datos observados, considerando la posible sobreestimación de la tasa de crecimiento inicial por parte del modelo de Gompertz.
5. Conclusiones
El presente estudio demuestra que el uso de modelos matemáticos basados en ecuaciones diferenciales simples representa de manera sólida los datos reales, como lo muestran los coeficientes de determinación (R2) tanto del modelo logístico como del modelo de Gompertz. En consecuencia, esto permite estimar valores epidemiológicos importantes como tc, la tasa de contagio y el número reproductivo básico (\(R_{0}\)).
Los datos de casos en las regiones geográficas seleccionadas mostraron una distribución no normal y un efecto significativo de la región geográfica sobre la velocidad de casos de viruela símica. Además, se observaron diferencias significativas entre las tasas de casos de estas regiones, excepto entre Europa y América del Sur, que presentaron curvas más aplanadas.
Finalmente, debido a la naturaleza y la simetría (o asimetría) de los modelos comparados, se observó que el modelo de Gompertz representó mejor los datos reales de casos, mientras que el modelo logístico permitió estimar valores consistentes de \(R_{0}\) (mediante aproximaciones gráficas y analíticas), más cercanos a los observados al inicio de la epidemia.
Declaraciones
- Contribución de autores
- Conceptualización, O.M.-S., O.M.-M. y R.D.C.; metodología, O.M.-S., P.P.-G., L.P.-T., O.M.-M. y R.D.C.; software, O.M.-S., P.P.-G., L.P.-T. y O.M.-M.; validación, O.M.-S., P.P.-G., L.P.-T., O.M.-M. y R.D.C.; análisis formal, O.M.-S., P.P.-G., L.P.-T., O.M.-M. y R.D.C.; investigación, O.M.-S., P.P.-G., L.P.-T., O.M.-M., C.J.S.-L. y R.D.C.; curación de datos, O.M.-S., P.P.-G., L.P.-T., O.M.-M. y R.D.C.; redacción—preparación del borrador original, O.M.-S., P.P.-G., L.P.-T., O.M.-M., C.J.S.-L. y R.D.C.; redacción—revisión y edición, O.M.-S. y R.D.C.; visualización, P.P.-G. y L.P.-T.; supervisión, O.M.-S. y R.D.C.; obtención de financiamiento, O.M.-S. Todos los autores han leído y aprobado la versión publicada del manuscrito.
- Financiamiento
- Esta investigación no recibió financiamiento externo para su ejecución. La tarifa de publicación fue financiada por el Vicerrectorado de Investigación de la Universidad Nacional Federico Villareal (UNFV).
- Declaración ética
- Comité de ética institucional: No aplica.
Consentimiento informado: No aplica. - Conflicto de intereses
- Los autores declaran no tener conflicto de intereses.
- Disponibilidad de datos y código
- El conjunto de datos principal utilizado para analizar las infecciones por viruela símica en el presente estudio se obtuvo del informe exhaustivo de la Organización Mundial de la Salud (OMS) sobre las tendencias mundiales de la viruela símica para el periodo 2022–2023 [26], dentro del intervalo de tiempo especificado, comprendido entre el 1 de mayo de 2022 y el 30 de abril de 2023.
- Agradecimientos
- Agradecemos sinceramente a la Organización Mundial de la Salud por poner a disposición la base de datos epidemiológica en la que se basa esta investigación. Asimismo, agradecemos a las siguientes instancias de la Universidad Nacional Federico Villareal (UNFV): Vicerrectorado de Investigación, Dirección General de Administración, Oficina Central de Planificación y Oficina de Abastecimiento y Servicios Generales, por hacer posible el financiamiento del cargo por procesamiento del artículo (APC) en acceso abierto.
Referencias
- 1Shchelkunov S.N., Totmenin A.V., Safronov P.F., Mikheev M.V., Gutorov V.V., Ryazankina O.I., Petrov N.A., Babkin I.V., Uvarova E.A., Sandakhchiev L.S., et al. Analysis of the Monkeypox Virus Genome. Virology. 2002;297:172–194. doi:10.1006/viro.2002.1446.
- 2Silva N.I.O., de Oliveira J.S., Kroon E.G., Trindade G.d.S., Drumond B.P. Here, There, and Everywhere: The Wide Host Range and Geographic Distribution of Zoonotic Orthopoxviruses. Viruses. 2020;13:43. doi:10.3390/v13010043.
- 3Ferdous J., Barek M.A., Hossen M.S., Bhowmik K.K., Islam M.S. A Review on Monkeypox Virus Outbreak: New Challenge for World. Health Sci. Rep. 2023;6:e1007. doi:10.1002/hsr2.1007.
- 4Marraha F., Al Faker I., Chahoub H., Benyamna Y., Rahmani N., Gallouj S. Monkeypox 2022 Outbreak: How Alarming Is the Situation? Epidemiological and Clinical Review. Clin. Pract. 2023;13:102–115. doi:10.3390/clinpract13010010.
- 5Niu L., Liang D., Ling Q., Zhang J., Li Z., Zhang D., Xia P., Zhu Z., Lin J., Shi A., et al. Insights into Monkeypox Pathophysiology, Global Prevalence, Clinical Manifestation and Treatments. Front. Immunol. 2023;14:1132250. doi:10.3389/fimmu.2023.1132250.
- 6Cheema A.Y., Ogedegbe O.J., Munir M., Alugba G., Ojo T.K. Monkeypox: A Review of Clinical Features, Diagnosis, and Treatment. Cureus. 2022;14:e26756. doi:10.7759/cureus.26756.
- 7Bethineedi L.D., Kutikuppala L.V.S., Kandi V. Monkeypox Epidemic: A Throwback from Smallpox Eradication. Cureus. 2022;14:e26577. doi:10.7759/cureus.26577.
- 8Qudus M.S., Cui X., Tian M., Afaq U., Sajid M., Qureshi S., Liu S., Ma J., Wang G., Faraz M., et al. The Prospective Outcome of the Monkeypox Outbreak in 2022 and Characterization of Monkeypox Disease Immunobiology. Front. Cell Infect. Microbiol. 2023;13:1196699. doi:10.3389/fcimb.2023.1196699.
- 9Lansiaux E., Jain N., Laivacuma S., Reinis A. The Virology of Human Monkeypox Virus (hMPXV): A Brief Overview. Virus Res. 2022;322:198932. doi:10.1016/j.virusres.2022.198932.
- 10Adekola H.A., Adekunle I.A., Egberongbe H.O., Onitilo S.A., Abdullahi I.N. Mathematical Modeling for Infectious Viral Disease: The COVID-19 Perspective. J. Public Aff. 2020;20:e2306. doi:10.1002/pa.2306.
- 11Josephus B.O., Nawir A.H., Wijaya E., Moniaga J.V., Ohyver M. Predict Mortality in Patients Infected with COVID-19 Virus Based on Observed Characteristics of the Patient Using Logistic Regression. Procedia Comput. Sci. 2021;179:871–877. doi:10.1016/j.procs.2021.01.076.
- 12Nopour R., Shanbehzadeh M., Kazemi-Arpanahi H. Using Logistic Regression to Develop a Diagnostic Model for COVID-19: A Single-Center Study. J. Educ. Health Promot. 2022;11:153. doi:10.4103/jehp.jehp_1017_21.
- 13Marín-Machuca O., Chacón R.D., Alvarez-Lovera N., Pesantes-Grados P., Pérez-Timaná L., Marín-Sánchez O. Mathematical Modeling of COVID-19 Cases and Deaths and the Impact of Vaccinations during Three Years of the Pandemic in Peru. Vaccines. 2023;11:1648. doi:10.3390/vaccines11111648.
- 14Tjørve K.M.C., Tjørve E. The Use of Gompertz Models in Growth Analyses, and New Gompertz-Model Approach: An Addition to the Unified-Richards Family. PLoS ONE. 2017;12:e0178691. doi:10.1371/journal.pone.0178691.
- 15Vaidya V.G., Alexandro F.J. Evaluation of Some Mathematical Models for Tumor Growth. Int. J. Biomed. Comput. 1982;13:19–36. doi:10.1016/0020-7101(82)90048-4.
- 16Gerlee P. The Model Muddle: In Search of Tumor Growth Laws. Cancer Res. 2013;73:2407–2411. doi:10.1158/0008-5472.CAN-12-4355.
- 17Kozusko F., Bajzer Z. Combining Gompertzian Growth and Cell Population Dynamics. Math. Biosci. 2003;185:153–167. doi:10.1016/S0025-5564(03)00094-4.
- 18Alharbi Y., Alqahtani A., Albalawi O., Bakouri M. Epidemiological Modeling of COVID-19 in Saudi Arabia: Spread Projection, Awareness, and Impact of Treatment. Appl. Sci. 2020;10:5895. doi:10.3390/app10175895.
- 19Ahmadi A., Fadaei Y., Shirani M., Rahmani F. Modeling and Forecasting Trend of COVID-19 Epidemic in Iran until May 13, 2020. Med. J. Islam. Repub. Iran. 2020;34:27. doi:10.47176/mjiri.34.27.
- 20Peter O.J., Kumar S., Kumari N., Oguntolu F.A., Oshinubi K., Musa R. Transmission Dynamics of Monkeypox Virus: A Mathematical Modelling Approach. Model. Earth Syst. Environ. 2022;8:3423–3434. doi:10.1007/s40808-021-01313-2.
- 21Usman S., Adamu I.I. Modeling the Transmission Dynamics of the Monkeypox Virus Infection with Treatment and Vaccination Interventions. J. Appl. Math. Phys. 2017;5:2335–2353. doi:10.4236/jamp.2017.512191.
- 22Ngungu M., Addai E., Adeniji A., Adam U.M., Oshinubi K. Mathematical Epidemiological Modeling, and Analysis of Monkeypox Dynamism with Non-Pharmaceutical Intervention Using Real Data from United Kingdom. Front. Public Health. 2023;11:1101436. doi:10.3389/fpubh.2023.1101436.
- 23Okyere S., Ackora-Prah J. Modeling and Analysis of Monkeypox Disease Using Fractional Derivatives. Results Eng. 2023;17:100786. doi:10.1016/j.rineng.2022.100786.
- 24Ohnishi A., Namekawa Y., Fukui T. Universality in COVID-19 Spread in View of the Gompertz Function. Prog. Theor. Exp. Phys. 2020;2020:123J01. doi:10.1093/ptep/ptaa148.
- 25Pelinovsky E., Kokoulina M., Epifanova A., Kurkin A., Kurkina O., Tang M., Macau E., Kirillin M. Gompertz Model in COVID-19 Spreading Simulation. Chaos Solitons Fractals. 2022;154:111699. doi:10.1016/j.chaos.2021.111699.
- 26World Health Organization. 2022–23 Mpox (Monkeypox) Outbreak: Global Trends. [(accessed on 11 October 2023)]. Available online: https://worldhealthorg.shinyapps.io/mpx_global/
- 27Wickham H., Bryan J. R Packages: Organize, Test, Document, and Share Your Code. 2nd ed. O’Reilly; Sebastopol, CA, USA: 2023.
- 28Kot M. Elements of Mathematical Ecology. Cambridge University Press; Cambridge, UK: 2001.
- 29Bacaër N. Verhulst and the Logistic Equation (1838). In: Bacaër N., editor. A Short History of Mathematical Population Dynamics. Springer; London, UK: 2011. pp. 35–39.
- 30Bronshtein I., Semendiaev K., Rojas I.H. Manual de Matemáticas para Ingenieros y Estudiantes. Mir; Moscow, Russia: 1977.
- 31Pereira S.M.C., Leslie G. Hypothesis Testing. Aust. Crit. Care. 2009;22:187–191. doi:10.1016/j.aucc.2009.08.003.
- 32McKight P.E., Najab J. Kruskal-Wallis Test. In: The Corsini Encyclopedia of Psychology. John Wiley & Sons, Ltd; Hoboken, NJ, USA: 2010.
- 33Elliott A.C., Woodward W.A. Statistical Analysis Quick Reference Guidebook. SAGE Publications, Inc.; Thousand Oaks, CA, USA: 2007.
- 34Baguena J.G. Regresión Lineal Simple. Universitat Oberta de Catalunya; Barcelona, Spain: 2019.
- 35Schober P., Boer C., Schwarte L.A. Correlation Coefficients: Appropriate Use and Interpretation. Anesth. Analg. 2018;126:1763–1768. doi:10.1213/ANE.0000000000002864.
- 36Vynnycky E., White R.G. An Introduction to Infectious Disease Modelling. Oxford University Press; New York, NY, USA: 2010.
- 37Guzzetta G., Mammone A., Ferraro F., Caraglia A., Rapiti A., Marziano V., Poletti P., Cereda D., Vairo F., Mattei G., et al. Early Estimates of Monkeypox Incubation Period, Generation Time, and Reproduction Number, Italy, May–June 2022. Emerg. Infect. Dis. 2022;28:2078–2081. doi:10.3201/eid2810.221126.
- 38Piret J., Boivin G. Pandemics Throughout History. Front. Microbiol. 2020;11:631736. doi:10.3389/fmicb.2020.631736.
- 39Sampath S., Khedr A., Qamar S., Tekin A., Singh R., Green R., Kashyap R. Pandemics Throughout the History. Cureus. 2021;13:e18136. doi:10.7759/cureus.18136.
- 40Chacón R.D., Astolfi-Ferreira C.S., Pereira P.C., Assayag M.S., Campos-Salazar A.B., De la Torre D., Sá L.R.M.d., Almeida S.R.Y.d., Rici R.E.G., Ferreira A.J.P. Outbreaks of Avipoxvirus Clade E in Vaccinated Broiler Breeders with Exacerbated Beak Injuries and Sex Differences in Severity. Viruses. 2022;14:773. doi:10.3390/v14040773.
- 41Brennan G., Stoian A.M.M., Yu H., Rahman M.J., Banerjee S., Stroup J.N., Park C., Tazi L., Rothenburg S. Molecular Mechanisms of Poxvirus Evolution. mBio. 2023;14:e0152622. doi:10.1128/mbio.01526-22.
- 42Li K., Yuan Y., Jiang L., Liu Y., Liu Y., Zhang L. Animal Host Range of Mpox Virus. J. Med. Virol. 2023;95:e28513. doi:10.1002/jmv.28513.
- 43Chacón R.D., Astolfi-Ferreira C.S., De la Torre D.I., de Sá L.R.M., Piantino Ferreira A.J. An Atypical Clinicopathological Manifestation of Fowlpox Virus Associated with Reticuloendotheliosis Virus in Commercial Laying Hen Flocks in Brazil. Transbound. Emerg. Dis. 2020;67:2923–2935. doi:10.1111/tbed.13668.
- 44Khamees A., Awadi S., Al-Shami K., Alkhoun H.A., Al-Eitan S.F., Alsheikh A.M., Saeed A., Al-Zoubi R.M., Zoubi M.S.A. Human Monkeypox Virus in the Shadow of the COVID-19 Pandemic. J. Infect. Public Health. 2023;16:1149–1157. doi:10.1016/j.jiph.2023.05.013.
- 45Aden D., Zaheer S., Kumar R., Ranga S. Monkeypox (Mpox) Outbreak during COVID-19 Pandemic-Past and the Future. J. Med. Virol. 2023;95:e28701. doi:10.1002/jmv.28701.
- 46Liao L.-C., Hsu C.-Y., Chen H.-H., Lai C.-C. Estimating the Global Spread of Epidemic Human Monkeypox with Bayesian Directed Acyclic Graphic Model. Vaccines. 2023;11:468. doi:10.3390/vaccines11020468.
- 47Miura F., van Ewijk C.E., Backer J.A., Xiridou M., Franz E., Op de Coul E., Brandwagt D., van Cleef B., van Rijckevorsel G., Swaan C., et al. Estimated Incubation Period for Monkeypox Cases Confirmed in the Netherlands, May 2022. Euro Surveill. 2022;27:2200448. doi:10.2807/1560-7917.ES.2022.27.24.2200448.
- 48Du Z., Shao Z., Bai Y., Wang L., Herrera-Diestra J.L., Fox S.J., Ertem Z., Lau E.H.Y., Cowling B.J. Reproduction Number of Monkeypox in the Early Stage of the 2022 Multi-Country Outbreak. J. Travel Med. 2022;29:taac099. doi:10.1093/jtm/taac099.
- 49Zingaropoli M.A., Parente A., Kertusha B., Campagna R., Tieghi T., Garattini S., Marocco R., Carraro A., Tortellini E., Guardiani M., et al. Longitudinal Virological and Immunological Profile in a Case of Human Monkeypox Infection. Open Forum Infect. Dis. 2022;9:ofac569. doi:10.1093/ofid/ofac569.
- 50Ophinni Y., Frediansyah A., Sirinam S., Megawati D., Stoian A.M., Enitan S.S., Akele R.Y., Sah R., Pongpirul K., Abdeen Z., et al. Monkeypox: Immune Response, Vaccination and Preventive Efforts. Narra J. 2022;2. doi:10.52225/narra.v2i3.90.
- 51World Health Organization. History of Smallpox Vaccination. [(accessed on 12 October 2023)]. Available online: https://www.who.int/news-room/spotlight/history-of-vaccination/history-of-smallpox-vaccination
- 52Mukherjee A.G., Wanjari U.R., Kannampuzha S., Das S., Murali R., Namachivayam A., Renu K., Ramanathan G., Doss C.G.P., Vellingiri B., et al. The Pathophysiological and Immunological Background of the Monkeypox Virus Infection: An Update. J. Med. Virol. 2023;95:e28206. doi:10.1002/jmv.28206.
- 53Zandi M., Shafaati M., Hosseini F. Mechanisms of Immune Evasion of Monkeypox Virus. Front. Microbiol. 2023;14:1106247. doi:10.3389/fmicb.2023.1106247.
- 54Shafaati M., Zandi M. Human Monkeypox (hMPXV) Re-Emergence: Host Immunity Status and Current Vaccines Landscape. J. Med. Virol. 2023;95:e28251. doi:10.1002/jmv.28251.
- 55Cohn H., Bloom N., Cai G.Y., Clark J.J., Tarke A., Bermúdez-González M.C., Altman D.R., Lugo L.A., Lobo F.P., Marquez S., et al. Mpox Vaccine and Infection-Driven Human Immune Signatures: An Immunological Analysis of an Observational Study. Lancet Infect. Dis. 2023;23:1302–1312. doi:10.1016/S1473-3099(23)00352-3.
- 56Faniran T.S., Ali A., Al-Hazmi N.E., Asamoah J.K.K., Nofal T.A., Adewole M.O. New Variant of SARS-CoV-2 Dynamics with Imperfect Vaccine. Complexity. 2022;2022:e1062180. doi:10.1155/2022/1062180.
- 57Ali A., Ullah S., Khan M.A. The Impact of Vaccination on the Modeling of COVID-19 Dynamics: A Fractional Order Model. Nonlinear Dyn. 2022;110:3921–3940. doi:10.1007/s11071-022-07798-5.
- 58Xu C., Wang Y., Cheng K., Yang X., Wang X., Guo S., Liu M., Liu X. A Mathematical Model to Study the Potential Hepatitis B Virus Infections and Effects of Vaccination Strategies in China. Vaccines. 2023;11:1530. doi:10.3390/vaccines11101530.
Material suplementario
Cómo citar este artículo
Marín-Sánchez, O., Pesantes-Grados, P., Pérez-Timaná, L., Marín-Machuca, O., Sánchez-Llatas, C. J., & Chacón, R. D. (2023). Evaluación epidemiológica comparativa de las infecciones por viruela símica a escala global y continental mediante los modelos matemáticos logístico y de Gompertz. Vaccines, 11(12), 1765. https://doi.org/10.3390/vaccines11121765
Artículo de acceso abierto bajo licencia CC BY 4.0. © 2023 Los autores. Publicado originalmente por MDPI en Vaccines; reproducido en la LYN BIOLEARNING – Biblioteca Científica según los términos de la licencia.
Comentarios
Aún no hay comentarios. ¿Tienes una pregunta o un aporte? Sé el primero en comentar.